



ThS. Nguyễn Thị Hồng Hạnh, ThS. Đặng Thị Vân & ThS. Hoàng Hải Long
Phòng Thí nghiệm Trung tâm và Bộ môn Hệ thống Nông nghiệp
TÓM TẮT
Bo (boron) là nguyên tố vi lượng thiết yếu đối với cây trồng, nguyên tốt này tham gia duy trì cấu trúc thành tế bào và sự phát triển của các tế bào non, trong đó có cơ quan sinh sản. Bo có vai trò rất cần thiết đối với sự phát triển hoa, chức năng hạt phấn, sinh trưởng ống phấn và quá trình thụ tinh; khả năng cung cấp, hấp thu và vận chuyển Bo chịu ảnh hưởng của đặc tính đất, chế độ nước và đặc điểm cây trồng. Khi thiếu Bo có thể làm rối loạn sự phát triển của cơ quan sinh sản, hạn chế chức năng hạt phấn và sinh trưởng ống phấn, qua đó ảnh hưởng đến khả năng thụ tinh, hình thành hạt và đậu quả. Tuy nhiên, mức độ biểu hiện phụ thuộc vào loài, giống, mức độ thiếu hụt và điều kiện môi trường. Trên cơ sở đó, bài viết nhấn mạnh việc quản lý Bo cần dựa trên kết quả phân tích đất và tế bào cây, kết hợp với khuyến cáo đã được kiểm chứng cho từng cây trồng nhằm hạn chế cả tình trạng thiếu và ngộ độc Bo.
Từ khóa: Bo; dinh dưỡng khoáng; hạt phấn; ống phấn; thụ tinh; đậu quả.
1. ĐẶT VẤN ĐỀ
Ra hoa, thụ phấn, thụ tinh và hình thành quả là những giai đoạn quan trọng quyết định năng suất, chất lượng nông sản. Các quá trình này chịu sự chi phối đồng thời của đặc điểm di truyền, trạng thái sinh lý của cây, điều kiện môi trường và dinh dưỡng khoáng. Theo quy luật tối thiểu Sprengel-Liebig, một nguyên tố dinh dưỡng thiết yếu có nguồn cung thấp hơn nhu cầu sinh lý có thể trở thành yếu tố giới hạn đối với sinh trưởng và năng suất; tuy nhiên, mức độ giới hạn còn phụ thuộc vào khả năng cung cấp các nguyên tố dinh dưỡng khác, điều kiện nước và đặc tính lý hóa của đất (van der Ploeg et al., 1999).
Trong các nguyên tố vi lượng, Bo (boron, ký hiệu hóa học B) có vai trò thiết yếu đối với cấu trúc thành tế bào, chức năng màng, hoạt động của mô phân sinh và sự phát triển của cơ quan sinh sản. Một trong những chức năng sinh hóa quan trọng của Bo là hình thành cầu nối borat giữa các đơn vị rhamnogalacturonan II (RG-II) trong mạng lưới pectin của thành tế bào. Cơ chế này góp phần duy trì tính toàn vẹn của thành tế bào, đặc biệt ở các mô đang phân chia và giãn nở. Bên cạnh đó, Bo có vai trò quan trọng trong sự phát triển của bao phấn, hạt phấn, quá trình nảy mầm của hạt phấn và sinh trưởng của ống phấn. Những quá trình này có ý nghĩa trực tiếp đối với khả năng thụ tinh, hình thành hạt và phát triển quả (Brown et al., 2002; Iwai et al., 2006).
Kết quả tổng hợp khoảng 1.500 mẫu đất do Phòng Thí nghiệm Trung tâm, Viện Khoa học Kỹ thuật Nông Lâm nghiệp Tây Nguyên phân tích tại các tỉnh Tây Nguyên trong giai đoạn 2022 – 2025 cho thấy, trên 90% số mẫu có hàm lượng Bo dễ tiêu thuộc nhóm nghèo (dưới 5 ppm), theo thang đánh giá của WASI (2024). Kết quả này cho thấy tình trạng hàm lượng Bo dễ tiêu thấp khá phổ biến trong các mẫu đất được khảo sát, là vấn đề cần quan tâm trong quản lý dinh dưỡng cây trồng tại khu vực Tây Nguyên. Tuy nhiên, hàm lượng Bo thấp trong đất không đồng nghĩa với việc cây trồng đều biểu hiện thiếu Bo về mặt sinh lý; việc đánh giá tình trạng dinh dưỡng Bo của cây cần kết hợp kết quả phân tích mô cây và xem xét các điều kiện canh tác liên quan.
Mặc dù Bo có vai trò thiết yếu đối với sinh trưởng và sinh sản của cây trồng, nguyên tố này chỉ thực sự trở thành yếu tố giới hạn khi lượng Bo cây có thể hấp thu không đáp ứng nhu cầu sinh lý. Mức độ ảnh hưởng phụ thuộc vào khả năng cung cấp Bo của đất, đặc điểm loài và giống, khả năng vận chuyển Bo trong cây, giai đoạn sinh trưởng và điều kiện môi trường. Vì vậy, việc làm rõ vai trò của Bo đối với quá trình ra hoa, thụ phấn, thụ tinh và hình thành quả, đồng thời nhận diện những ảnh hưởng khi thiếu Bo, có ý nghĩa quan trọng trong quản lý dinh dưỡng và nâng cao hiệu quả sản xuất cây trồng.
2. VAI TRÒ SINH LÝ CỦA BO ĐỐI VỚI QUÁ TRÌNH SINH SẢN Ở THỰC VẬT
2.1. Vai trò đối với cấu trúc và chức năng tế bào
Một trong những chức năng sinh hóa được xác định rõ nhất của Bo là tham gia hình thành cầu nối borat giữa các phân tử rhamnogalacturonan II (RG-II), một cấu phần pectin của thành tế bào thực vật. Các cầu nối này góp phần ổn định mạng lưới pectin và duy trì tính toàn vẹn cơ học của thành tế bào. Khi thiếu Bo, mức độ liên kết RG-II bị suy giảm, làm biến đổi cấu trúc thành tế bào và ảnh hưởng đến quá trình phân chia, giãn nở tế bào, nhất là tại các mô non có tốc độ sinh trưởng cao (Brown et al., 2002). Bo còn có liên quan đến chức năng màng sinh chất, cân bằng ion và một số quá trình trao đổi chất. Tuy nhiên, các tác động ngoài thành tế bào có cơ chế phức tạp và không nên quy tất cả biểu hiện thiếu Bo về một cơ chế đơn nhất.
2.2. Vai trò đối với cơ quan sinh sản, hạt phấn và ống phấn
Sự hình thành hoa và phát triển cơ quan sinh sản đòi hỏi quá trình phân chia, phân hóa và sinh trưởng tế bào diễn ra liên tục. Do tham gia duy trì cấu trúc thành tế bào và chức năng của mô non, Bo cần thiết cho sự phát triển bình thường của các cơ quan sinh sản. Sau khi hạt phấn tiếp xúc với đầu nhụy tương thích, hạt phấn nảy mầm và hình thành ống phấn; ống phấn sinh trưởng xuyên qua mô vòi nhụy để đưa giao tử đực đến noãn. Đây là quá trình có tốc độ sinh trưởng tế bào cao và đòi hỏi sự tổ chức phù hợp của thành tế bào. Bo tham gia ổn định mạng lưới pectin thông qua liên kết RG-II-borat, qua đó góp phần duy trì điều kiện cấu trúc cho sự phát triển của ống phấn.
Iwai et al. (2006) nghiên cứu trên thuốc lá cho thấy gene NpGUT1, liên quan đến quá trình hình thành liên kết borat giữa các phân tử RG-II, cần thiết cho sự phát triển mô sinh sản đực, mô sinh sản cái và quá trình thụ tinh. Khi chức năng gene bị ức chế, mô sinh sản và ống phấn phát triển bất thường; ống phấn có thể phân nhánh hoặc ngừng sinh trưởng, làm cản trở quá trình thụ tinh. Đây là bằng chứng cơ chế quan trọng về mối liên hệ giữa liên kết Bo-pectin và chức năng sinh sản. Kết quả ở thuốc lá không tự động chứng minh mức đáp ứng năng suất khi bón Bo ở các loài cây trồng khác.
3. CÁC YẾU TỐ CHI PHỐI KHẢ NĂNG CUNG CẤP VÀ HẤP THU BO
3.1. Đặc tính đất, pH và hàm lượng Bo dễ tiêu
Hàm lượng Bo tổng số trong đất không phản ánh trực tiếp lượng Bo cây có thể hấp thu. Bo trong đất phân bố ở nhiều dạng, gồm dạng hòa tan trong dung dịch đất, dạng hấp phụ trên bề mặt keo đất, dạng liên kết với chất hữu cơ và dạng nằm trong cấu trúc khoáng. Khả năng cung cấp cho cây phụ thuộc chủ yếu vào nồng độ Bo trong dung dịch đất và khả năng giải phóng Bo từ các dạng có thể trao đổi. Quá trình này chịu ảnh hưởng của thành phần cơ giới, loại và hàm lượng khoáng sét, oxit/hydroxit Fe và Al, chất hữu cơ, độ ẩm và pH đất (Goldberg, 1997; Brdar-Jokanović, 2020).
Trong dung dịch đất, Bo tồn tại chủ yếu dưới dạng axit boric (H₃BO₃) và khi pH tăng, tỷ lệ ion borat [B(OH)₄⁻] tăng lên. Ở khoảng pH thường gặp trong nhiều đất nông nghiệp, axit boric thường là dạng chiếm ưu thế. Sự thay đổi pH có thể làm thay đổi cân bằng dạng hóa học và tương tác hấp phụ, nhưng mức độ ảnh hưởng phụ thuộc vào đặc tính đất; do đó, không thể chỉ dựa vào pH để kết luận đất thiếu hoặc thừa Bo. Đất có thành phần cơ giới nhẹ, hàm lượng Bo dễ tiêu thấp và khả năng giữ dinh dưỡng hạn chế thường có nguy cơ thất thoát Bo cao hơn. Trong điều kiện mưa nhiều hoặc tưới quá mức, Bo hòa tan có thể di chuyển theo dòng nước và bị rửa trôi khỏi vùng rễ, nhất là trên đất thô, nghèo chất hữu cơ (Goldberg, 1997; Shireen et al., 2018).
3.2. Chế độ nước, thời tiết và đặc điểm cây trồng
Rễ cây hấp thu Bo chủ yếu dưới dạng axit boric từ dung dịch đất. Khả năng hấp thu Bo phụ thuộc vào hàm lượng Bo dễ tiêu, lượng nước trong đất và tình trạng sinh trưởng của hệ rễ. Bo được vận chuyển từ rễ lên các bộ phận phía trên chủ yếu theo dòng mạch gỗ, gắn liền với quá trình hút nước và thoát hơi nước của cây. Khi đất khô, lượng nước trong đất giảm, làm hạn chế sự di chuyển của Bo đến bề mặt rễ và quá trình hấp thu Bo của cây. Ngược lại, mưa lớn hoặc tưới quá nhiều có thể làm tăng nguy cơ rửa trôi Bo, đặc biệt trên đất có thành phần cơ giới nhẹ.
Khả năng phân phối Bo giữa các cơ quan khác nhau đáng kể giữa các loài. Ở nhiều loài, Bo có tính di động hạn chế trong mạch libe nên các cơ quan non phụ thuộc nhiều vào nguồn cung mới từ rễ. Tuy nhiên, ở những loài tạo lượng polyol đáng kể, Bo có thể tạo phức với các hợp chất như sorbitol hoặc mannitol và được tái phân phối qua mạch libe. Cà phê được ghi nhận trong nhóm cây có khả năng vận chuyển Bo qua mạch libe tương đối linh động; vì vậy, không nên áp dụng nhận định Bo gần như bất động trong libe cho cà phê một cách tuyệt đối (Brown & Shelp, 1997; Brdar-Jokanović, 2020). Bên cạnh dinh dưỡng, nhiệt độ, mưa, độ ẩm không khí, hoạt động của tác nhân thụ phấn và sự đồng bộ giữa tung phấn – tiếp nhận phấn cũng ảnh hưởng đến thụ phấn, thụ tinh và đậu quả.
4. ẢNH HƯỞNG CỦA THIẾU BO ĐẾN QUÁ TRÌNH RA HOA, THỤ TINH VÀ ĐẬU QUẢ
4.1. Biểu hiện thiếu Bo trên cơ quan sinh dưỡng
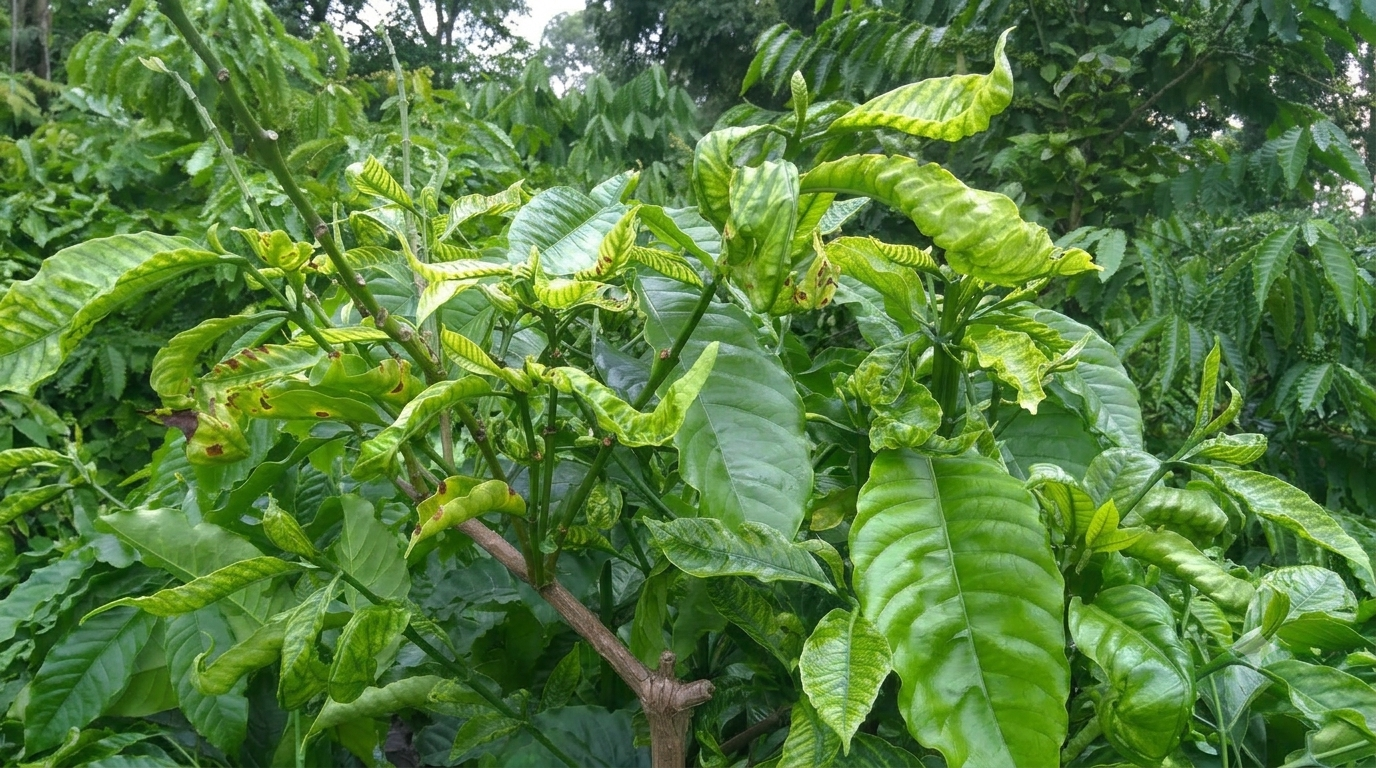
Hình 1. Triệu chứng thiếu Bo trên cây cà phê
Lá non nhỏ, biến dạng, xoắn và mép lá không đều, đỉnh sinh trưởng bị chết, các cành bên phát triển bất thường tạo dạng hình quạt
Thiếu Bo thường biểu hiện rõ ở mô non, đỉnh sinh trưởng, rễ non và các cơ quan có tốc độ phân chia, giãn nở tế bào cao. Triệu chứng có thể gồm đỉnh sinh trưởng bị tổn thương hoặc chết, lá non nhỏ và biến dạng, thân ngắn hoặc giòn, rễ phát triển kém và mô non biến dạng. Tuesta-Monteza et al. (2023) cung cấp hình ảnh triệu chứng dinh dưỡng trên lá cà phê trong bộ dữ liệu CoLeaf-DB; tuy nhiên, ảnh triệu chứng đơn lẻ không đủ để chẩn đoán thiếu Bo ngoài đồng ruộng. Các biểu hiện này có thể bị nhầm lẫn với thiếu nguyên tố khác, tổn thương rễ, sâu bệnh hoặc stress môi trường. Vì vậy, cần kết hợp quan sát triệu chứng với phân tích đất, phân tích mô cây và lịch sử bón phân.
4.2. Ảnh hưởng đến sự phát triển cơ quan sinh sản và quá trình thụ tinh
Trên cơ quan sinh sản, thiếu Bo có thể làm rối loạn sự phát triển của hoa, bao phấn và hạt phấn. Trong điều kiện thiếu hụt nghiêm trọng, sức sống hạt phấn và khả năng nảy mầm có thể suy giảm; sự kéo dài của ống phấn cũng bị hạn chế, làm giảm khả năng tiếp cận noãn và hoàn thành quá trình thụ tinh. Đây là cơ sở sinh lý giải thích mối liên hệ giữa thiếu Bo với sự suy giảm khả năng hình thành hạt và quả. Tuy nhiên, mức độ ảnh hưởng phụ thuộc vào loài, giống, mức độ thiếu hụt và điều kiện sinh thái.
Ở cấp độ tế bào, Iwai et al. (2006) cho thấy sự suy giảm hình thành liên kết borat giữa các phân tử RG-II có thể ảnh hưởng đến sự phát triển mô sinh sản và quá trình thụ tinh ở thuốc lá. Kết quả này góp phần làm rõ cơ sở sinh lý về vai trò của Bo đối với chức năng sinh sản ở thực vật.
 |
|
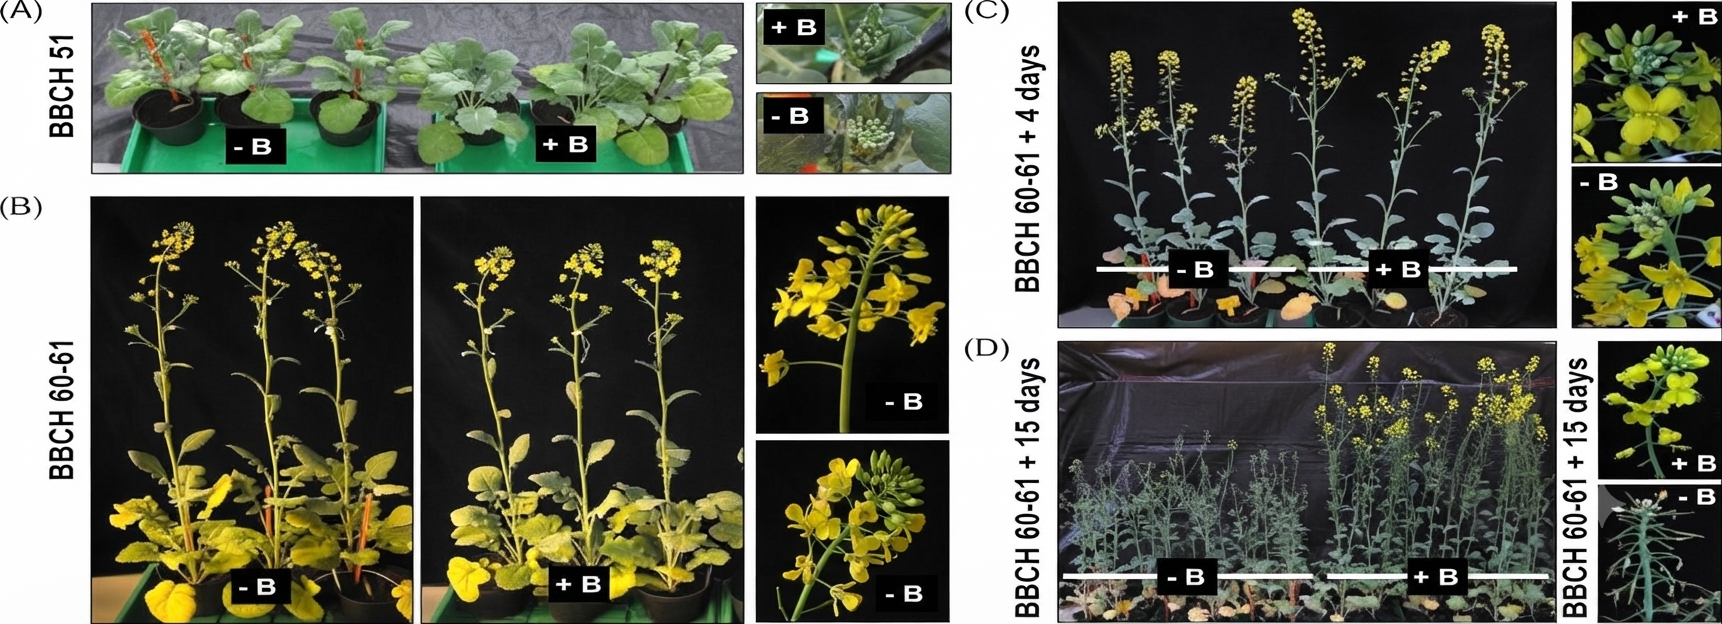
Hình 2. Ảnh hưởng của tình trạng cung cấp Bo đến sự phát triển cụm hoa ở cây cải dầu (Brassica napus) – Đủ Bo (+ B): cụm hoa phát triển bình thường, nụ hoa xanh và hoa không biểu hiện triệu chứng thiếu Bo. – Thiếu Bo (- B): hoa có thể biến dạng, cánh hoa nhăn, đầu nhụy lộ ra; nụ hoa có biểu hiện héo hoặc hoại tử. |
Nghiên cứu của Tölle et al. (2026) trên cây cải dầu cho thấy thiếu Bo làm xuất hiện các bất thường về hình thái cụm hoa, đồng thời ảnh hưởng đến quá trình phát triển hoa và hình thành quả có hạt. Kết quả này bổ sung bằng chứng thực nghiệm về ảnh hưởng của tình trạng cung cấp Bo đến chức năng sinh sản. Tuy nhiên, đây là kết quả trên một loài cây cụ thể trong điều kiện thí nghiệm, không nên suy rộng trực tiếp về mức độ đáp ứng ở các cây trồng khác.
4.3. Ảnh hưởng đến quá trình đậu quả và phát triển quả
Đậu quả là kết quả của một chuỗi quá trình sinh lý liên tiếp, từ hình thành hoa, thụ phấn, nảy mầm hạt phấn, sinh trưởng ống phấn đến thụ tinh và phát triển ban đầu của quả. Khi thiếu Bo, sự phát triển của mô sinh sản, khả năng nảy mầm của hạt phấn và sinh trưởng ống phấn có thể bị hạn chế, làm giảm khả năng thụ tinh và hình thành quả. Sau khi quả hình thành, Bo tiếp tục cần thiết cho các mô đang phân chia và giãn nở. Vì vậy, thiếu Bo nghiêm trọng có thể cản trở sự phát triển bình thường của quả, đồng thời góp phần làm tăng nguy cơ rụng hoa và quả non.
Ở cây có múi, thiếu Bo có thể biểu hiện trên quả thông qua hiện tượng quả biến dạng, vỏ và lớp cùi phát triển bất thường, phần thịt quả có thể xuất hiện các vùng hóa nâu hoặc tích tụ chất dạng gôm.
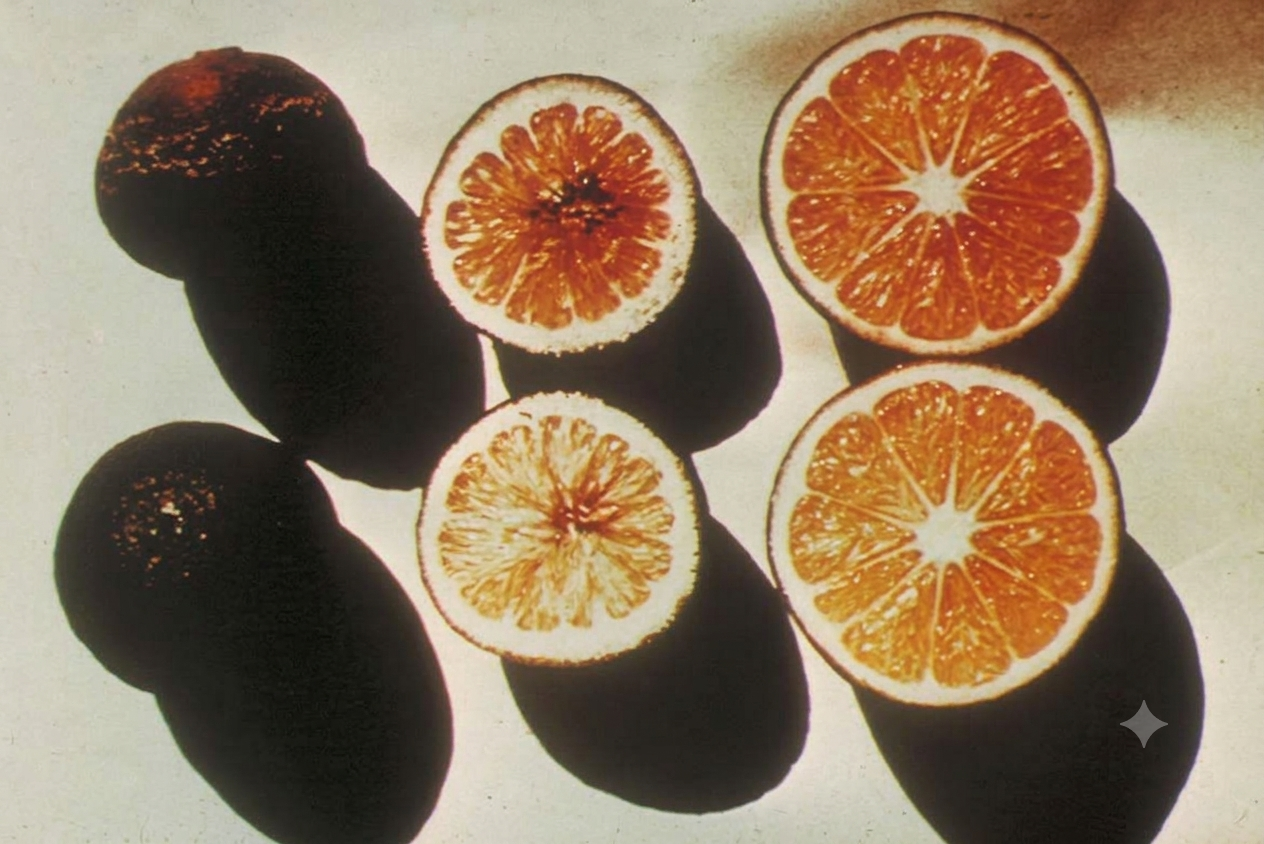 Hình 3. So sánh biểu hiện quả có múi trong điều kiện đủ Bo và thiếu Bo
Bên phải: quả bình thường; Bên trái: quả trên cây thiếu Bo, vỏ sần sùi, quả cứng và ít nước.
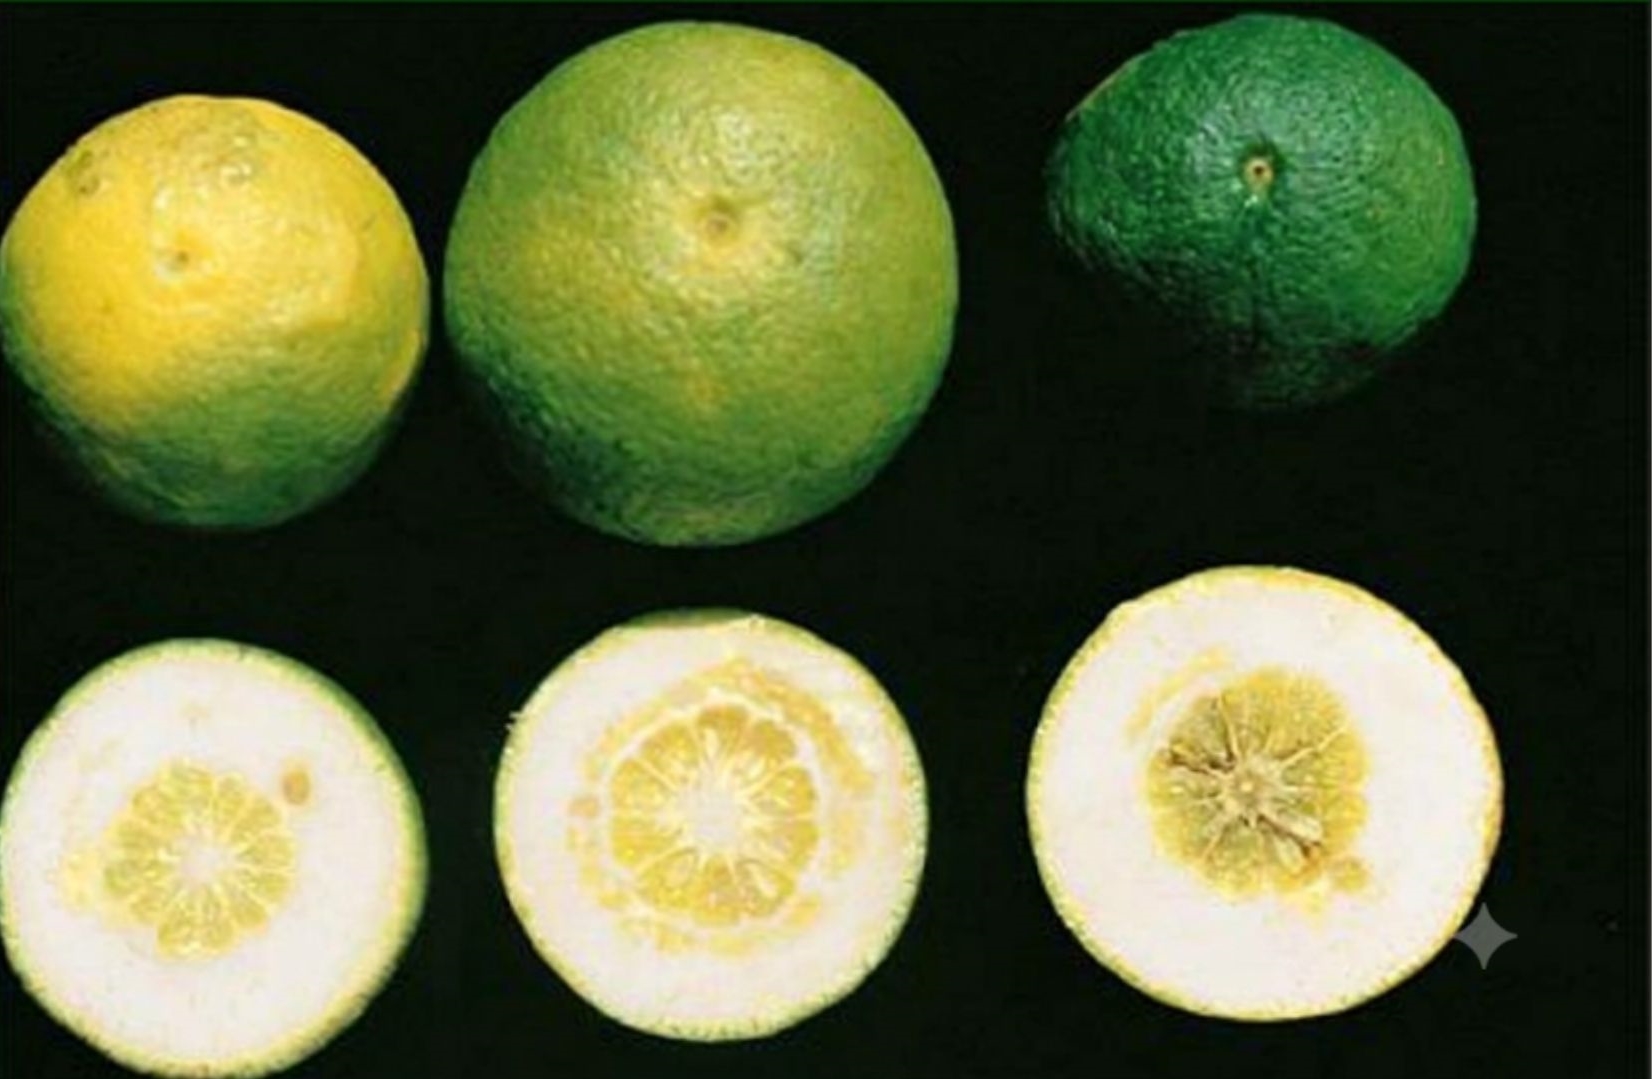
Hình 4. Biểu hiện thiếu Bo trên quả cây có múi
Quả biến dạng, lớp cùi trắng dày và cấu trúc bên trong phát triển bất thường.
Tuy nhiên, rụng hoa và quả non là hiện tượng đa nguyên nhân; do đó, cần đánh giá đồng thời các yếu tố như cân bằng carbohydrate, nước, nhiệt độ, thụ phấn, tải quả, sâu bệnh và các nguyên tố dinh dưỡng khác trước khi quy kết cho thiếu Bo.
5. ĐỊNH HƯỚNG QUẢN LÝ VÀ SỬ DỤNG BO HỢP LÝ TRONG CANH TÁC
Bo là nguyên tố vi lượng thiết yếu, nhưng khoảng cách giữa mức thiếu và mức gây độc tương đối hẹp. Vì vậy, việc bổ sung Bo cần dựa trên chẩn đoán dinh dưỡng, không nên sử dụng theo cảm tính. Chẩn đoán cần kết hợp kết quả phân tích Bo dễ tiêu trong đất, hàm lượng Bo trong mô cây, triệu chứng biểu hiện và lịch sử sử dụng phân bón. Các kết quả phân tích cần được diễn giải theo phương pháp, giai đoạn lấy mẫu và ngưỡng phù hợp với từng loài cây trồng; không áp dụng một ngưỡng chung cho mọi loại đất và cây trồng.
Bo có thể được bổ sung qua đất hoặc qua lá. Bón đất nhằm bổ sung nguồn Bo cho vùng rễ, trong khi phun qua lá có thể hỗ trợ cung cấp Bo trực tiếp cho mô cây trong những giai đoạn sinh trưởng nhất định. Hiệu quả của mỗi phương thức phụ thuộc vào dạng phân, đặc tính đất, điều kiện thời tiết, khả năng hấp thu và mức độ thiếu hụt. Đối với cây lấy quả, cần xác định thời điểm bổ sung phù hợp với đặc điểm sinh trưởng của từng loài; không mặc định phun Bo trước hoặc trong khi nở hoa sẽ làm tăng tỷ lệ đậu quả. Liều lượng và thời điểm sử dụng cần căn cứ vào kết quả nghiên cứu hoặc khuyến cáo đã được kiểm chứng.
Ngược lại, cung cấp Bo vượt quá nhu cầu có thể gây ngộ độc, thường biểu hiện qua vàng lá, cháy đầu và mép lá, sau đó có thể hoại tử. Nguy cơ này có thể xuất hiện do bón lặp lại, sử dụng nhiều nguồn phân chứa Bo hoặc nước tưới giàu Bo. Vì vậy, cần kiểm soát tổng lượng Bo đầu vào, theo dõi tình trạng dinh dưỡng của đất và cây, đồng thời đặt việc quản lý Bo trong chương trình cân đối dinh dưỡng và quản lý nước.
6. KẾT LUẬN
Bo là nguyên tố vi lượng thiết yếu, tham gia duy trì cấu trúc thành tế bào và hoạt động bình thường của các cơ quan sinh sản. Thiếu Bo có thể ảnh hưởng đến sự phát triển hoa, chức năng hạt phấn, sinh trưởng ống phấn và quá trình thụ tinh, qua đó hạn chế khả năng hình thành hạt và đậu quả. Tuy nhiên, mức độ ảnh hưởng phụ thuộc vào đặc điểm loài, giống và điều kiện môi trường; khả năng vận chuyển Bo trong mạch libe cũng khác nhau giữa các loài cây trồng. Do khoảng cách giữa thiếu và độc Bo tương đối hẹp, việc bổ sung cần dựa trên kết quả chẩn đoán dinh dưỡng và khuyến cáo phù hợp với từng cây trồng. Quản lý Bo hợp lý, cân đối và đúng thời điểm góp phần duy trì dinh dưỡng, hỗ trợ quá trình sinh sản và ổn định năng suất cây trồng.
TÀI LIỆU THAM KHẢO
- Brown, P. H., & Shelp, B. J. (1997). Boron mobility in plants. Plant and Soil, 193, 85-101.
- Brown, P. H., Bellaloui, N., Wimmer, M. A., Bassil, E. S., Ruiz, J., Hu, H., Pfeffer, H., Dannel, F., & Römheld, V. (2002). Boron in plant biology. Plant Biology, 4(2), 205-223.
- Brdar-Jokanović, M. (2020). Boron toxicity and deficiency in agricultural plants. International Journal of Molecular Sciences, 21(4), 1424.
- Chiu, W. T. F. (n.d.). Boron deficiency in citrus (Plate 129) [Photograph]. Food and Fertilizer Technology Center (FFTC).
- Goldberg, S. (1997). Reactions of boron with soils. Plant and Soil, 193, 35-48.
- Iwai, H., Hokura, A., Oishi, M., Chida, H., Ishii, T., Sakai, S., & Satoh, S. (2006). The gene responsible for borate cross-linking of pectin rhamnogalacturonan-II is required for plant reproductive tissue development and fertilization. Proceedings of the National Academy of Sciences, 103(44), 16592-16597.
- Palma Mendoza, J. F. (2009). Manual de uso del boro. SQM Industrial S.A.
- Shireen, F., Nawaz, M. A., Chen, C., Zhang, Q., Zheng, Z., Sohail, H., Sun, J., Cao, H., Huang, Y., & Bie, Z. (2018). Boron: Functions and approaches to enhance its availability in plants for sustainable agriculture. International Journal of Molecular Sciences, 19(7), 1856.
- Tölle, J. B., Alcock, T. D., & Bienert, G. P. (2026). Borax promotes fertility of Brassica napus better than other boron species at suboptimal supply. Journal of Plant Nutrition and Soil Science, 189(3), 362-375.
- Tuesta-Monteza, V. A., Mejia-Cabrera, H. I., & Arcila-Diaz, J. (2023). CoLeaf-DB: Peruvian coffee leaf images dataset for coffee leaf nutritional deficiencies detection and classification. Data in Brief, 48, 109226.
- van der Ploeg, R. R., Böhm, W., & Kirkham, M. B. (1999). On the origin of the theory of mineral nutrition of plants and the law of the minimum. Soil Science Society of America Journal, 63(5), 1055-1062.
- Viện Khoa học Kỹ thuật Nông Lâm nghiệp Tây Nguyên. (2024). Tiêu chuẩn cơ sở TCCS: 2024/VNLT – Thang đánh giá lý, hóa tính trong đất.